Analytik
Antimikrobielle Peptide: Aufbau, Mechanismen und Forschungsstand
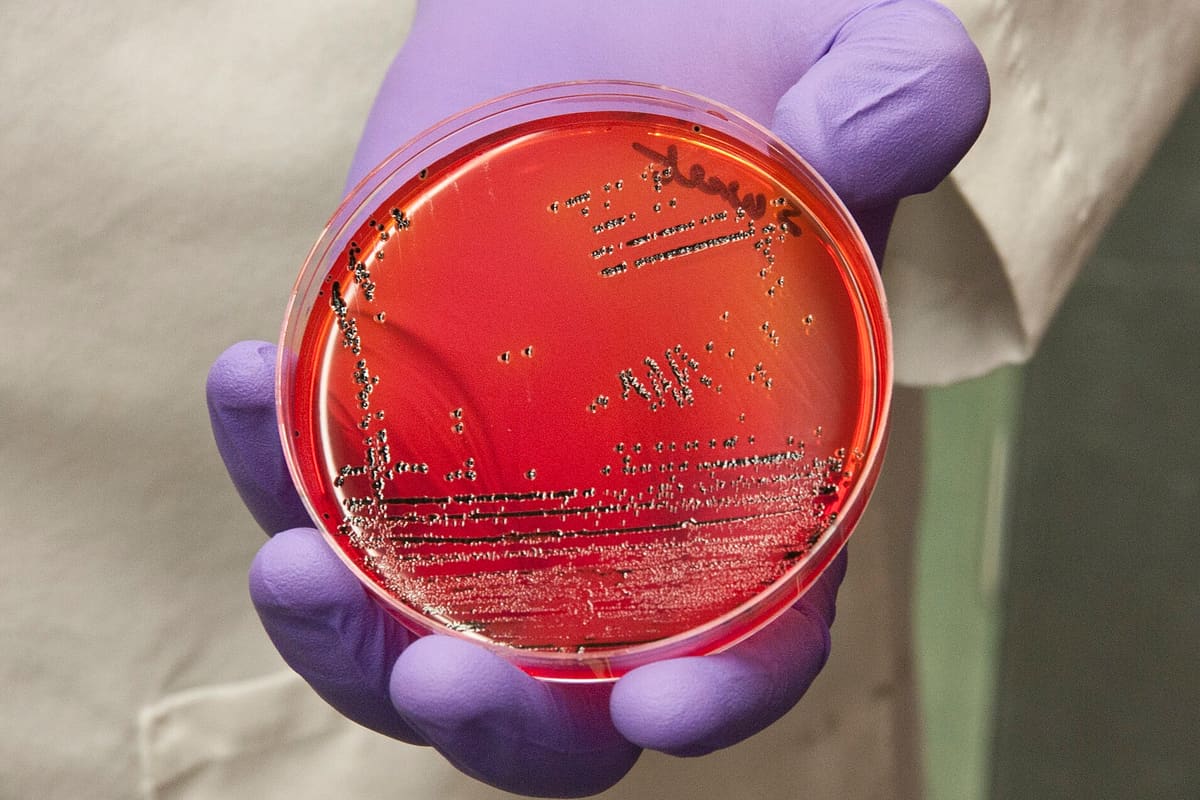
Lange bevor es Antibiotika aus Schimmelpilzen gab, verteidigten sich Pflanzen, Insekten, Amphibien und Säugetiere mit Peptiden gegen Mikroorganismen. Diese antimikrobiellen Peptide sind Teil der angeborenen Abwehr fast aller Lebewesen, und seit ihrer systematischen Beschreibung in den 1980er-Jahren sind sie ein eigenes Forschungsfeld. Dieser Beitrag erklärt, was sie strukturell verbindet, wie sie eingeteilt werden und worauf man bei der Arbeit mit ihnen im Labor achten muss.
Gemeinsame Merkmale
Antimikrobielle Peptide sind strukturell vielfältig, teilen aber zwei Eigenschaften, die ihre Wirkweise erklären:
- Positive Nettoladung. Die meisten tragen deutlich mehr Lysin- und Argininreste als saure Reste und sind bei neutralem pH mehrfach positiv geladen.
- Amphipathie. In ihrer aktiven Struktur ordnen sie hydrophobe und geladene Reste auf gegenüberliegenden Seiten an. Eine Seite des Moleküls sucht das Wasser, die andere die Fettsäureketten einer Membran.
Die Kombination zielt auf einen Unterschied zwischen Bakterien- und Säugetierzellen: Bakterienmembranen enthalten an ihrer Außenseite viele negativ geladene Lipide, Säugetiermembranen sind außen überwiegend neutral und enthalten Cholesterin. Die positive Ladung zieht die Peptide deshalb bevorzugt an Bakterienmembranen.
Die wichtigsten Klassen
| Klasse | Struktur | Beispiele |
|---|---|---|
| α-helikale Peptide | lineare Kette, faltet sich an Membranen zur Helix | LL-37 (Mensch), Magainine (Krallenfrosch), Cecropine (Insekten) |
| β-Faltblatt-Peptide | durch mehrere Disulfidbrücken stabilisiert | α- und β-Defensine |
| Peptide mit ungewöhnlicher Zusammensetzung | reich an bestimmten Aminosäuren | Indolicidin (Tryptophan-reich), Histatine (Histidin-reich) |
| Modifizierte und zyklische Peptide | enthalten Thioetherbrücken, Lipidketten oder nicht-proteinogene Bausteine | Nisin (Lantibiotikum), Polymyxine, Daptomycin |
Die letzte Gruppe zeigt, wie nah das Feld an der Praxis liegt: Nisin ist als Lebensmittelzusatzstoff E 234 zugelassen, Polymyxine und Daptomycin sind etablierte Antibiotika. Sie werden allerdings nicht am Ribosom, sondern von Enzymkomplexen der Bakterien selbst aufgebaut und sind chemisch komplexer als die linearen Peptide der angeborenen Abwehr.
LL-37: das menschliche Cathelicidin
Beim Menschen ist LL-37 das einzige Mitglied der Cathelicidin-Familie. Es entsteht aus einem größeren Vorläuferprotein, von dem es enzymatisch abgespalten wird, und verdankt seinen Namen den ersten beiden Aminosäuren und seiner Länge: LL-37 beginnt mit zwei Leucinresten und besteht aus 37 Aminosäuren.
Wir führen LL-37 als Referenzmaterial mit der Sequenz LLGDFFRKSKEKIGKEFKRIVQRIKDFLRNLVPRTES, der Summenformel C205H340N60O53 und einer Molekülmasse von 4493,37 g/mol. Die Sequenz zeigt das typische Muster: elf basische Reste (Lysin und Arginin) stehen fünf sauren gegenüber, die Nettoladung bei neutralem pH liegt bei etwa +6. In wässriger Lösung ist LL-37 überwiegend ungeordnet, an Membranen und bei höherer Salzkonzentration faltet es sich zu einer amphipathischen Helix. Details stehen im Materialprofil LL-37.
Wie sie Membranen stören
Für die Wechselwirkung mit Membranen werden in der Literatur drei Modelle diskutiert:
- Fassdauben-Modell (barrel-stave). Mehrere helikale Peptide lagern sich wie die Dauben eines Fasses zusammen und bilden eine Pore durch die Membran.
- Toroidale Pore. Peptide und Lipidköpfe biegen sich gemeinsam nach innen und bilden eine Pore, deren Wand teils aus Peptid, teils aus Lipid besteht.
- Teppichmodell (carpet). Die Peptide bedecken die Membranoberfläche flächig, bis diese ab einer Schwellenkonzentration wie durch ein Detergens aufgelöst wird.
Welches Modell zutrifft, hängt vom Peptid, der Membranzusammensetzung und der Konzentration ab. Daneben gibt es Peptide, die die Membran passieren und im Zellinneren an Nukleinsäuren oder Enzyme binden. Die Frage nach der Sekundärstruktur an der Membran lässt sich gut mit CD-Spektroskopie untersuchen.
Worauf es im Labor ankommt
Die gängigste Messgröße ist die minimale Hemmkonzentration (MHK), bestimmt in Verdünnungsreihen auf Mikrotiterplatten. Mit kationischen Peptiden hat dieser Standardtest einige Fallstricke:
- Adsorption an Polystyrol. Positiv geladene Peptide haften stark an den üblichen Polystyrolplatten. Die tatsächlich verfügbare Konzentration liegt dann unter der eingesetzten, und die MHK wird zu hoch bestimmt. Polypropylenplatten und Zusätze wie geringe Mengen Rinderserumalbumin oder Essigsäure in der Stammlösung mindern das Problem; siehe Adsorption an Gefäßwänden.
- Salz- und Serumempfindlichkeit. Hohe Salzkonzentrationen schwächen die elektrostatische Anziehung an die Membran, Serumproteine binden Peptid. Medium und Zusätze gehören deshalb genau ins Protokoll.
- Peptidgehalt statt Einwaage. Kationische Peptide werden meist als TFA- oder Acetatsalz geliefert; der Peptidgehalt pro Milligramm liegt deutlich unter 100 Prozent. Wer nach Einwaage rechnet, überschätzt die eingesetzte Menge; siehe Peptidgehalt und Reinheit und Peptidsalze.
- Kontrollen. Ein Vergleichsantibiotikum mit bekannter MHK und eine Lösungsmittelkontrolle machen Ausreißer erkennbar; siehe Kontrollen im Versuchsaufbau.
Research Use Only. LL-37 und alle weiteren im Katalog geführten Materialien sind ausschließlich für die wissenschaftliche Laborforschung bestimmt. Sie sind keine Arzneimittel und nicht zur Anwendung am oder im menschlichen oder tierischen Körper bestimmt.
Häufige Fragen
Was sind antimikrobielle Peptide?
Kurze, meist 10 bis 50 Aminosäuren lange Peptide, die in nahezu allen Lebewesen als Teil der angeborenen Abwehr vorkommen. Die meisten sind positiv geladen und amphipathisch, haben also eine wasserliebende und eine fettliebende Seite.
Wie greifen antimikrobielle Peptide Bakterien an?
Viele lagern sich an die negativ geladene Bakterienmembran an und stören sie, etwa durch Porenbildung oder durch Auflösung der Membran nach dem sogenannten Teppichmodell. Andere dringen in die Zelle ein und greifen dort an Nukleinsäuren oder Enzymen an.
Warum sind MHK-Tests mit Peptiden schwierig?
Kationische Peptide haften stark an Polystyrol-Oberflächen, reagieren empfindlich auf Salze und Serumproteine im Medium und können aggregieren. Ohne angepasste Materialien und Bedingungen werden die gemessenen Hemmkonzentrationen systematisch zu hoch.