Analytik
Strukturformel einer Aminosäure: Grundgerüst, Seitenkette und Chiralität
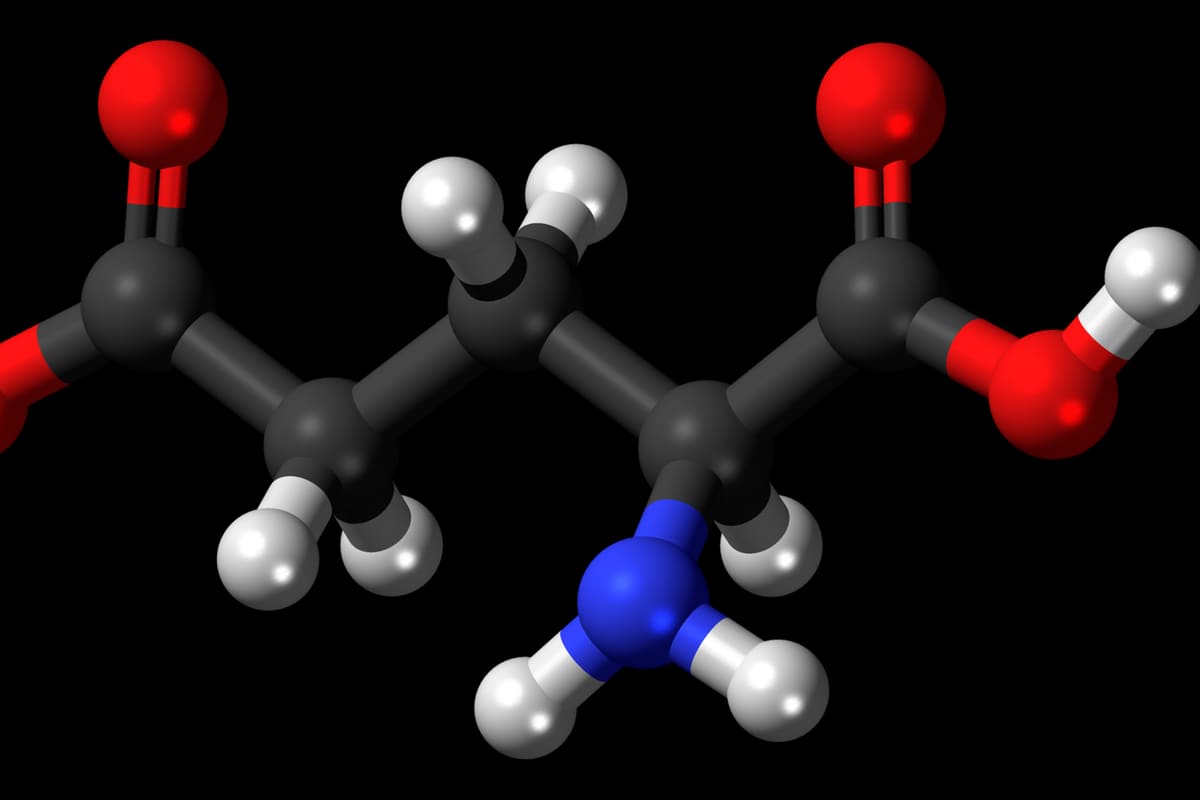
Jedes Peptid ist eine Kette aus Aminosäuren, und jede Aminosäure folgt demselben Bauplan. Wer diesen Bauplan einmal verstanden hat, liest Sequenzangaben, Summenformeln und Molekülmassen auf einem Datenblatt mit anderen Augen. Dieser Beitrag erklärt die allgemeine Strukturformel, die Rolle der Seitenkette und warum die räumliche Anordnung am α-Kohlenstoff für die Peptidanalytik zählt.
Das Grundgerüst: vier Gruppen um ein Kohlenstoffatom
Im Zentrum jeder α-Aminosäure steht ein Kohlenstoffatom, der sogenannte α-Kohlenstoff. An ihm hängen vier Gruppen:
- die Aminogruppe –NH2, die basisch reagiert,
- die Carboxylgruppe –COOH, die sauer reagiert,
- ein Wasserstoffatom,
- die Seitenkette R, die jede Aminosäure von der anderen unterscheidet.
Als Kurzformel geschrieben ergibt das H2N–CH(R)–COOH. Diese Schreibweise ist die „allgemeine Strukturformel“, die in Lehrbüchern und auf Datenblättern steht. Sie ist eine Konvention: In wässriger Lösung bei neutralem pH liegt die Aminosäure als Zwitterion vor, mit protonierter Aminogruppe (–NH3⁺) und deprotonierter Carboxylgruppe (–COO⁻). Welcher Ladungszustand herrscht, hängt vom pH-Wert ab — das ist die Grundlage des isoelektrischen Punkts.
Die Seitenkette entscheidet
Das Grundgerüst ist bei allen 20 proteinogenen Aminosäuren gleich. Unterschiedlich ist allein die Seitenkette R, und sie bestimmt fast alles, was an einer Aminosäure interessant ist: Größe, Ladung, Polarität, Reaktivität.
Einige Beispiele zeigen die Spannweite:
| Aminosäure | Seitenkette R | Eigenschaft |
|---|---|---|
| Glycin | –H | kleinste Aminosäure, kein Stereozentrum |
| Alanin | –CH3 | unpolar, klein |
| Serin | –CH2–OH | polar, Hydroxygruppe |
| Glutaminsäure | –CH2–CH2–COOH | sauer, bei neutralem pH negativ geladen |
| Lysin | –(CH2)4–NH2 | basisch, bei neutralem pH positiv geladen |
| Cystein | –CH2–SH | Thiolgruppe, bildet Disulfidbrücken |
| Tryptophan | Indolring | aromatisch, absorbiert UV-Licht bei 280 nm |
Die Seitenketten erklären viele Befunde der Laborpraxis: Warum ein Peptid mit vielen Lysin- und Argininresten gut wasserlöslich ist, warum Methionin und Cystein oxidieren und warum Tryptophan- und Tyrosinreste eine UV-Quantifizierung bei 280 nm überhaupt erst möglich machen. Die Einteilung nach Eigenschaften beschreibt der Beitrag Aminosäuren: die 20 proteinogenen Bausteine.
Chiralität: L und D
Weil der α-Kohlenstoff vier verschiedene Gruppen trägt, ist er ein Stereozentrum. Es gibt zwei spiegelbildliche Anordnungen, die sich zueinander verhalten wie linke und rechte Hand. Sie heißen nach der Fischer-Projektion L und D. Die einzige Ausnahme ist Glycin: Mit zwei Wasserstoffatomen am α-Kohlenstoff hat es kein Stereozentrum.
Natürliche Proteine bestehen fast ausschließlich aus L-Aminosäuren. Synthetische Forschungspeptide enthalten dagegen häufig gezielt eingebaute D-Aminosäuren, etwa um die Kette gegen enzymatischen Abbau zu schützen — GHRP-6 oder Melanotan II sind Beispiele. In Sequenzangaben wird das ausdrücklich vermerkt, etwa als „D-Phe“ oder mit Kleinbuchstaben im Einbuchstabencode. Warum eine ungewollte D-Form ein Qualitätsproblem ist, erklärt der Beitrag zur Racemisierung.
Von der Strukturformel zur Peptidkette
Verknüpfen sich zwei Aminosäuren, reagiert die Carboxylgruppe der einen mit der Aminogruppe der anderen. Dabei wird ein Wassermolekül abgespalten, und es entsteht eine Amidbindung — die Peptidbindung. Das hat eine direkte Folge für jede Massenberechnung: Die Molekülmasse eines Peptids ist die Summe der Aminosäuremassen minus einem Wassermolekül (18,02 g/mol) je Bindung.
Die Kette hat danach immer zwei unterschiedliche Enden: den N-Terminus mit der freien Aminogruppe und den C-Terminus mit der freien Carboxylgruppe. Sequenzen werden konventionell vom N- zum C-Terminus geschrieben. Wie sich diese Enden chemisch verändern lassen, beschreibt der Beitrag Die Peptidkette: Rückgrat, N-Terminus und C-Terminus.
Nicht-proteinogene Aminosäuren
Neben den 20 proteinogenen Bausteinen verwenden Synthesechemiker weitere Aminosäuren, die dem Grundgerüst folgen, aber eine ungewöhnliche Seitenkette tragen oder am α-Kohlenstoff anders substituiert sind. Norleucin (Nle) in Melanotan I und II ersetzt das oxidationsempfindliche Methionin; α-Aminoisobuttersäure (Aib) trägt zwei Methylgruppen am α-Kohlenstoff und ist damit wie Glycin nicht chiral. Warum gerade Aib in vielen modernen Analoga steckt, erklärt der Beitrag zur α-Aminoisobuttersäure.
Warum das für ein Datenblatt zählt
Die allgemeine Strukturformel ist Schulstoff — und trotzdem die Grundlage jeder Plausibilitätsprüfung. Wer weiß, dass jede Bindung ein Wasser kostet, kann eine angegebene Molekülmasse aus der Sequenz nachrechnen. Wer weiß, welche Seitenketten oxidieren, versteht die Lagerempfehlung. Und wer weiß, dass „D-“ ein chemisch anderer Stoff ist, liest eine Sequenzangabe genauer. Die Rechenwege dazu stehen in Molekülmasse aus der Sequenz berechnen.
Research Use Only. Alle im Katalog geführten Materialien sind ausschließlich für die wissenschaftliche Laborforschung bestimmt und nicht zur Anwendung am oder im menschlichen oder tierischen Körper bestimmt.
Häufige Fragen
Wie lautet die allgemeine Strukturformel einer Aminosäure?
Ein zentrales Kohlenstoffatom (α-C) trägt vier Gruppen: eine Aminogruppe (–NH2), eine Carboxylgruppe (–COOH), ein Wasserstoffatom und eine variable Seitenkette R. Kurz: H2N–CH(R)–COOH.
Warum gibt es L- und D-Aminosäuren?
Weil der α-Kohlenstoff bei allen proteinogenen Aminosäuren außer Glycin vier verschiedene Substituenten trägt und damit ein Stereozentrum ist. Die beiden spiegelbildlichen Formen heißen L und D; in natürlichen Proteinen kommt fast ausschließlich die L-Form vor.
Liegen Aminosäuren in Wasser wirklich als H2N–CH(R)–COOH vor?
Nein. Bei neutralem pH ist die Aminogruppe protoniert und die Carboxylgruppe deprotoniert. Die Aminosäure liegt als Zwitterion H3N⁺–CH(R)–COO⁻ vor. Die neutrale Schreibweise ist eine Konvention für Formeln.